随着空间多组学(空间转录组、空间表观组、空间蛋白组、空间代谢组、及空间形态组等)技术的快速发展和革新,研究者已经能够在同一或相邻组织切片上近乎全景式地捕获生命活动的多维组学信息。如何将这些在特征维度、数据分布和检测点空间结构上存在差异的多模态组学数据进行有效和灵活的整合,仍是当前空间多组学分析和下游生物学意义解析亟待突破的瓶颈。
近日,福建农林大学海峡联合研究院基因组学研究中心马晓开教授团队在《Advanced Science》期刊发表题为“Flexible Integration of Structurally Diverse Spatial Multi-omics with AgaeSMO”的研究论文。该研究展示了团队最新开发的空间多组学深度学习整合模型AgaeSMO,并在多个模拟和实测(e.g. 人类淋巴结、小鼠脑组织、兰花花芽切片等)数据集上验证其在结构多样化的空间组学多模态灵活整合中的卓越性能和广泛应用(包括:空间域识别和聚类、细胞微环境异质性检测、生物学可解释性挖掘、跨平台兼容性等方面)。
空间多组学整合分析的三重挑战
空间多组学技术旨在同时捕获中心法则流动过程中的多层级组学信息。目前,已有Spatial CITE-seq、DBIT-seq、Stereo-CITE-seq、SMA protocol以及Spatial ATAC-RNA-Seq等技术实现了同一切片上的双组学检测。如何将双组学及多组学数据信息有效和灵活整合,是目前空间多组学研究的难点和热点问题。与此同时,组织切片染色图像(e.g. H&E染色图)蕴含着丰富的细胞形态异质性信息。然而,组织切片图像始终未被正式视为一种可参与整合的组学模态。研究团队指出,当前空间组学多模态整合面临三大挑战。其一,不同模态间的检测点空间结构存在固有差异,例如10x Visium采用六邻域结构,而MALDI-MSI则为四邻域结构,导致空间位置无法一一对应。现有工具如SpatialGlue、COSMOS、SpaMV等大多针对同一切片配对模态设计,难以处理结构非配对数据。其二,多组学不仅包含核酸/分子等信息,组织切片染色图像(e.g. H&E染色图)包含大量的细胞形态异质性信息,但现有方法(e.g. SpaGCN)仅利用平均RGB值构建邻接矩阵,丢失了绝大部分细胞形态学特征,不能作为独立形态组学模态参与多组学整合。其三,现有的空间多组学整合模型多使用图卷积神经网络(GCN)算法,无法充分提取和整合结构异质性的非配对空间组学的spot特征。
AgaeSMO模型的架构与技术突破
针对上述瓶颈,研究团队开发了空间多组学深度学习整合模型AgaeSMO。该模型以图注意力网络(GATs)为骨干,通过空间邻接图和细胞类型感知的KNN特征图分别编码各模态信息,并利用注意力加权模块实现模态融合。AgaeSMO采用GATs作为骨干网络,能够动态地为邻近节点分配不同的重要性权重,从而选择性关注相关邻居并抑制噪声。这一自适应聚合机制对于多组学整合尤为有利,使网络能够学习上下文感知的表示以捕获更异质性的特征。消融实验表明,将GATs替换为GCN后,聚类结果中引入的噪声显著增加,验证了GATs在特征提取中的关键作用。针对结构非配对的空间多组学模态,AgaeSMO设计了一种基于图交叉注意力的跨引导对齐策略:具体而言,以模态1(e.g. 空间转录组)作为Query,以模态2(e.g. 空间代谢组)作为Key,计算模态1的spot相邻区域模态2的spot的注意力权重,随后根据权重聚合模态2的特征 Value,从而构建与模态1每个空间坐标相对应的模态2表示。这一过程使代谢组嵌入能够被转录组嵌入查询,并学习到与给定转录组模式相关的代谢组表示。该策略从根本上解决了SpatialGlue和COSMOS等工具无法处理的结构非配对模态整合问题。此外,AgaeSMO首次将组织切片染色图像(e.g. H&E染色图)作为一种正式的形态组学模态进行整合:模型以每个测序spot为中心分割H&E图像块,将其展平为图像嵌入,并与其他模态进行融合,展示出整合形态组学模态在提升空间聚类中的重要作用,产生更具生物学意义的下游结果。
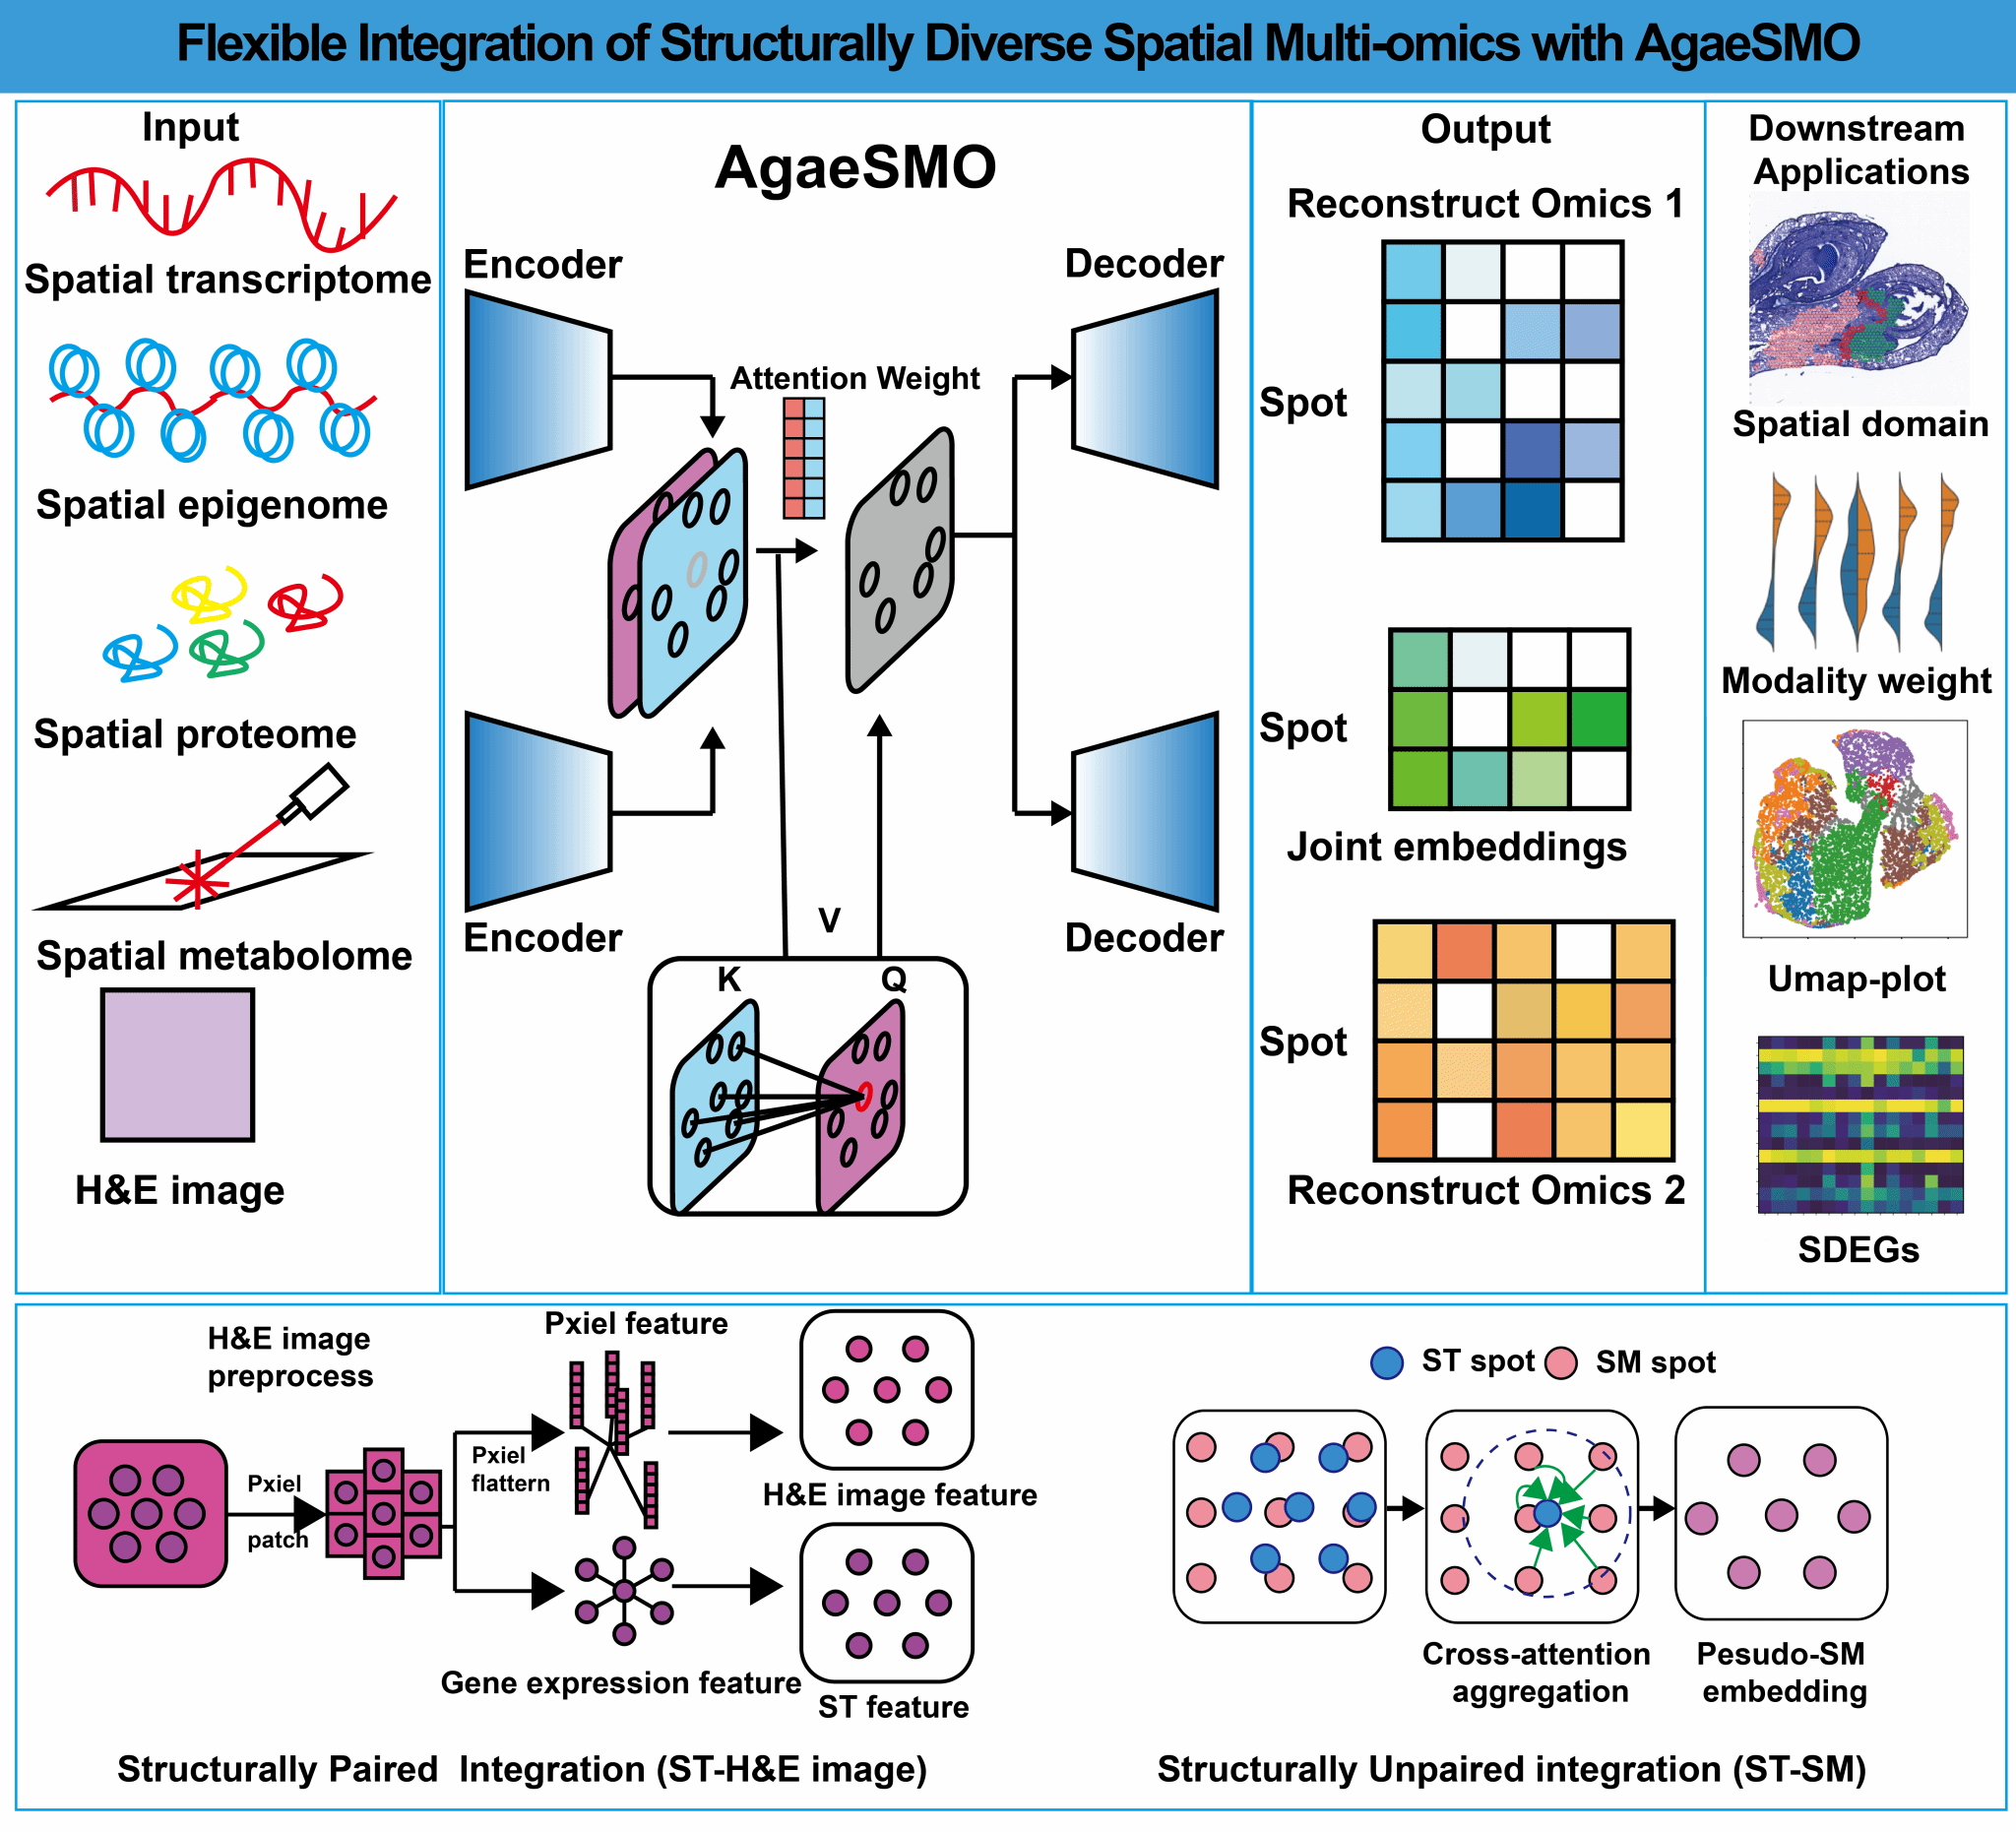
图1. AgaeSMO的模型架构与跨模态整合策略
多平台基准测试展现AgaeSMO卓越的空间聚类性能
研究团队在模拟数据集和多个真实空间多组学数据集上对AgaeSMO进行了基准测试,对比了SpatialGlue、COSMOS、SpaMV、3d-OT、soFusion、TotalVI、MultiVI、MOFA+等现有空间多组学整合工具,以及STAGATE、DeepST、SpaGCN、STMGraph等空间单组学工具。在包含转录组和蛋白组互补信息的模拟数据集中,AgaeSMO在七项聚类指标上均表现出更小的方差,显示出稳健的性能。在具有标注的人类淋巴结数据集上,AgaeSMO(ARI = 0.3779)超越所有对比方法。值得注意的是,AgaeSMO能够识别出髓质窦区域的空间分散分布特征,而SpatialGlue、soFusion、3d-OT以及单组学算法均无法实现这一具有重要生物学意义的空间聚类效果。
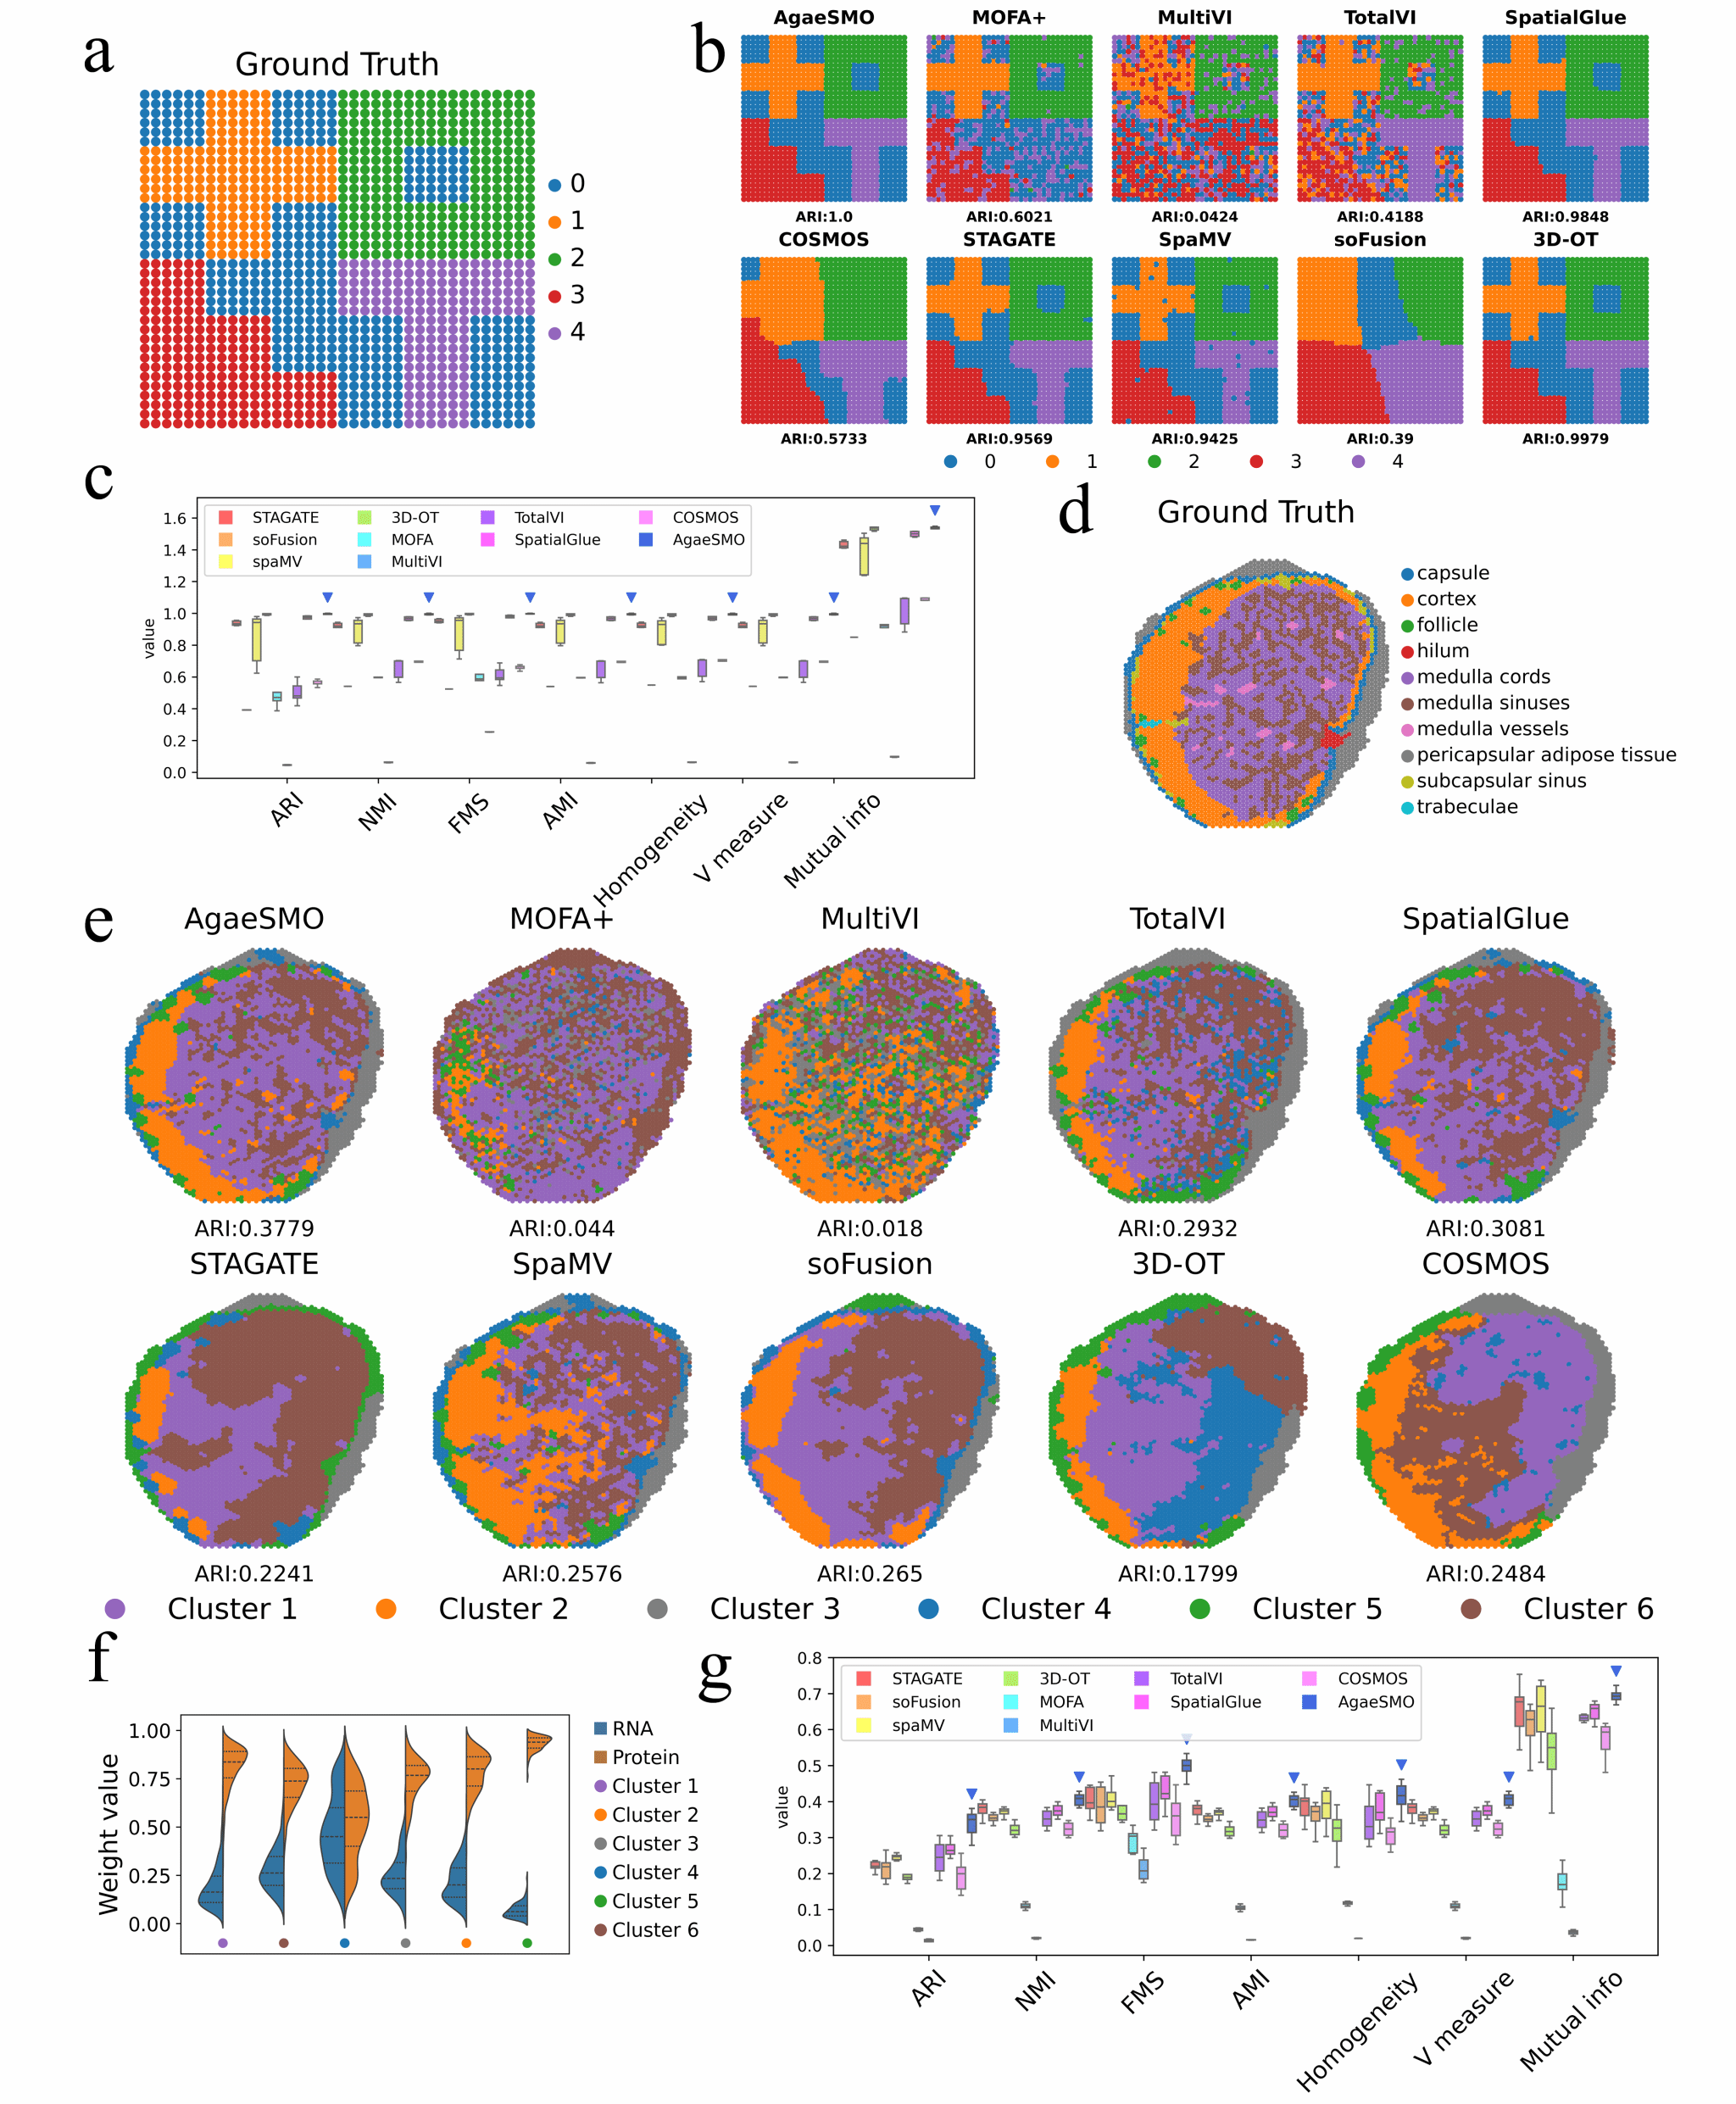
图2. AgaeSMO在空间多组学模拟数据集及实测数据集中的基准测试
结构非配对空间组学多模态的整合及细胞空间微环境解析
AgaeSMO在结构非配对空间多组学数据上的表现尤为引人注目。在帕金森病6-OHDA小鼠脑模型切片数据集中,根据原始注释,右尾壳核区域为损伤区,左尾壳核区域为健康区,这一点在代谢组表现为多巴胺代谢(离子强度如 m/z 674.2805所示)存在差异。理论上,左右尾壳核区域的空间聚类的空间域应当不同。
研究结果显示,单独使用RNA模态时,AgaeSMO将两个尾壳核区域聚类为同一空间域;单独使用MSI模态时,聚类显示出左右尾壳核区域差异。然而,AgaeSMO整合RNA-MSI模态后,将两个尾壳核区域成功聚类为两个独立空间域并且保留了RNA聚类的精细结构。相比其他单组学算法,仅STAGATE能够识别三份切片中的不同尾壳核区域,而STMGraph仅能识别一份。在SMA 109 B1数据集上,AgaeSMO能够区分ACB健康与损伤区,而STAGATE和STMGraph均无法实现。 通过下游空间差异表达分析,研究团队在聚类簇2、6、10中鉴定出Prkeg和Marcks等帕金森病强相关基因。Prkeg突变已被证实可导致大鼠帕金森综合征,而Marcks是PD/DLB病理中轴突退化前聚集阶段的标志物。值得注意的是,这两个基因是聚类簇2、6、10内部检测到的差异表达基因,而非这些簇与其他簇之间的差异基因,表明了检测尾壳核内三个差异区域的必要性及AgaeSMO在细胞空间微环境解析中的突出能力。
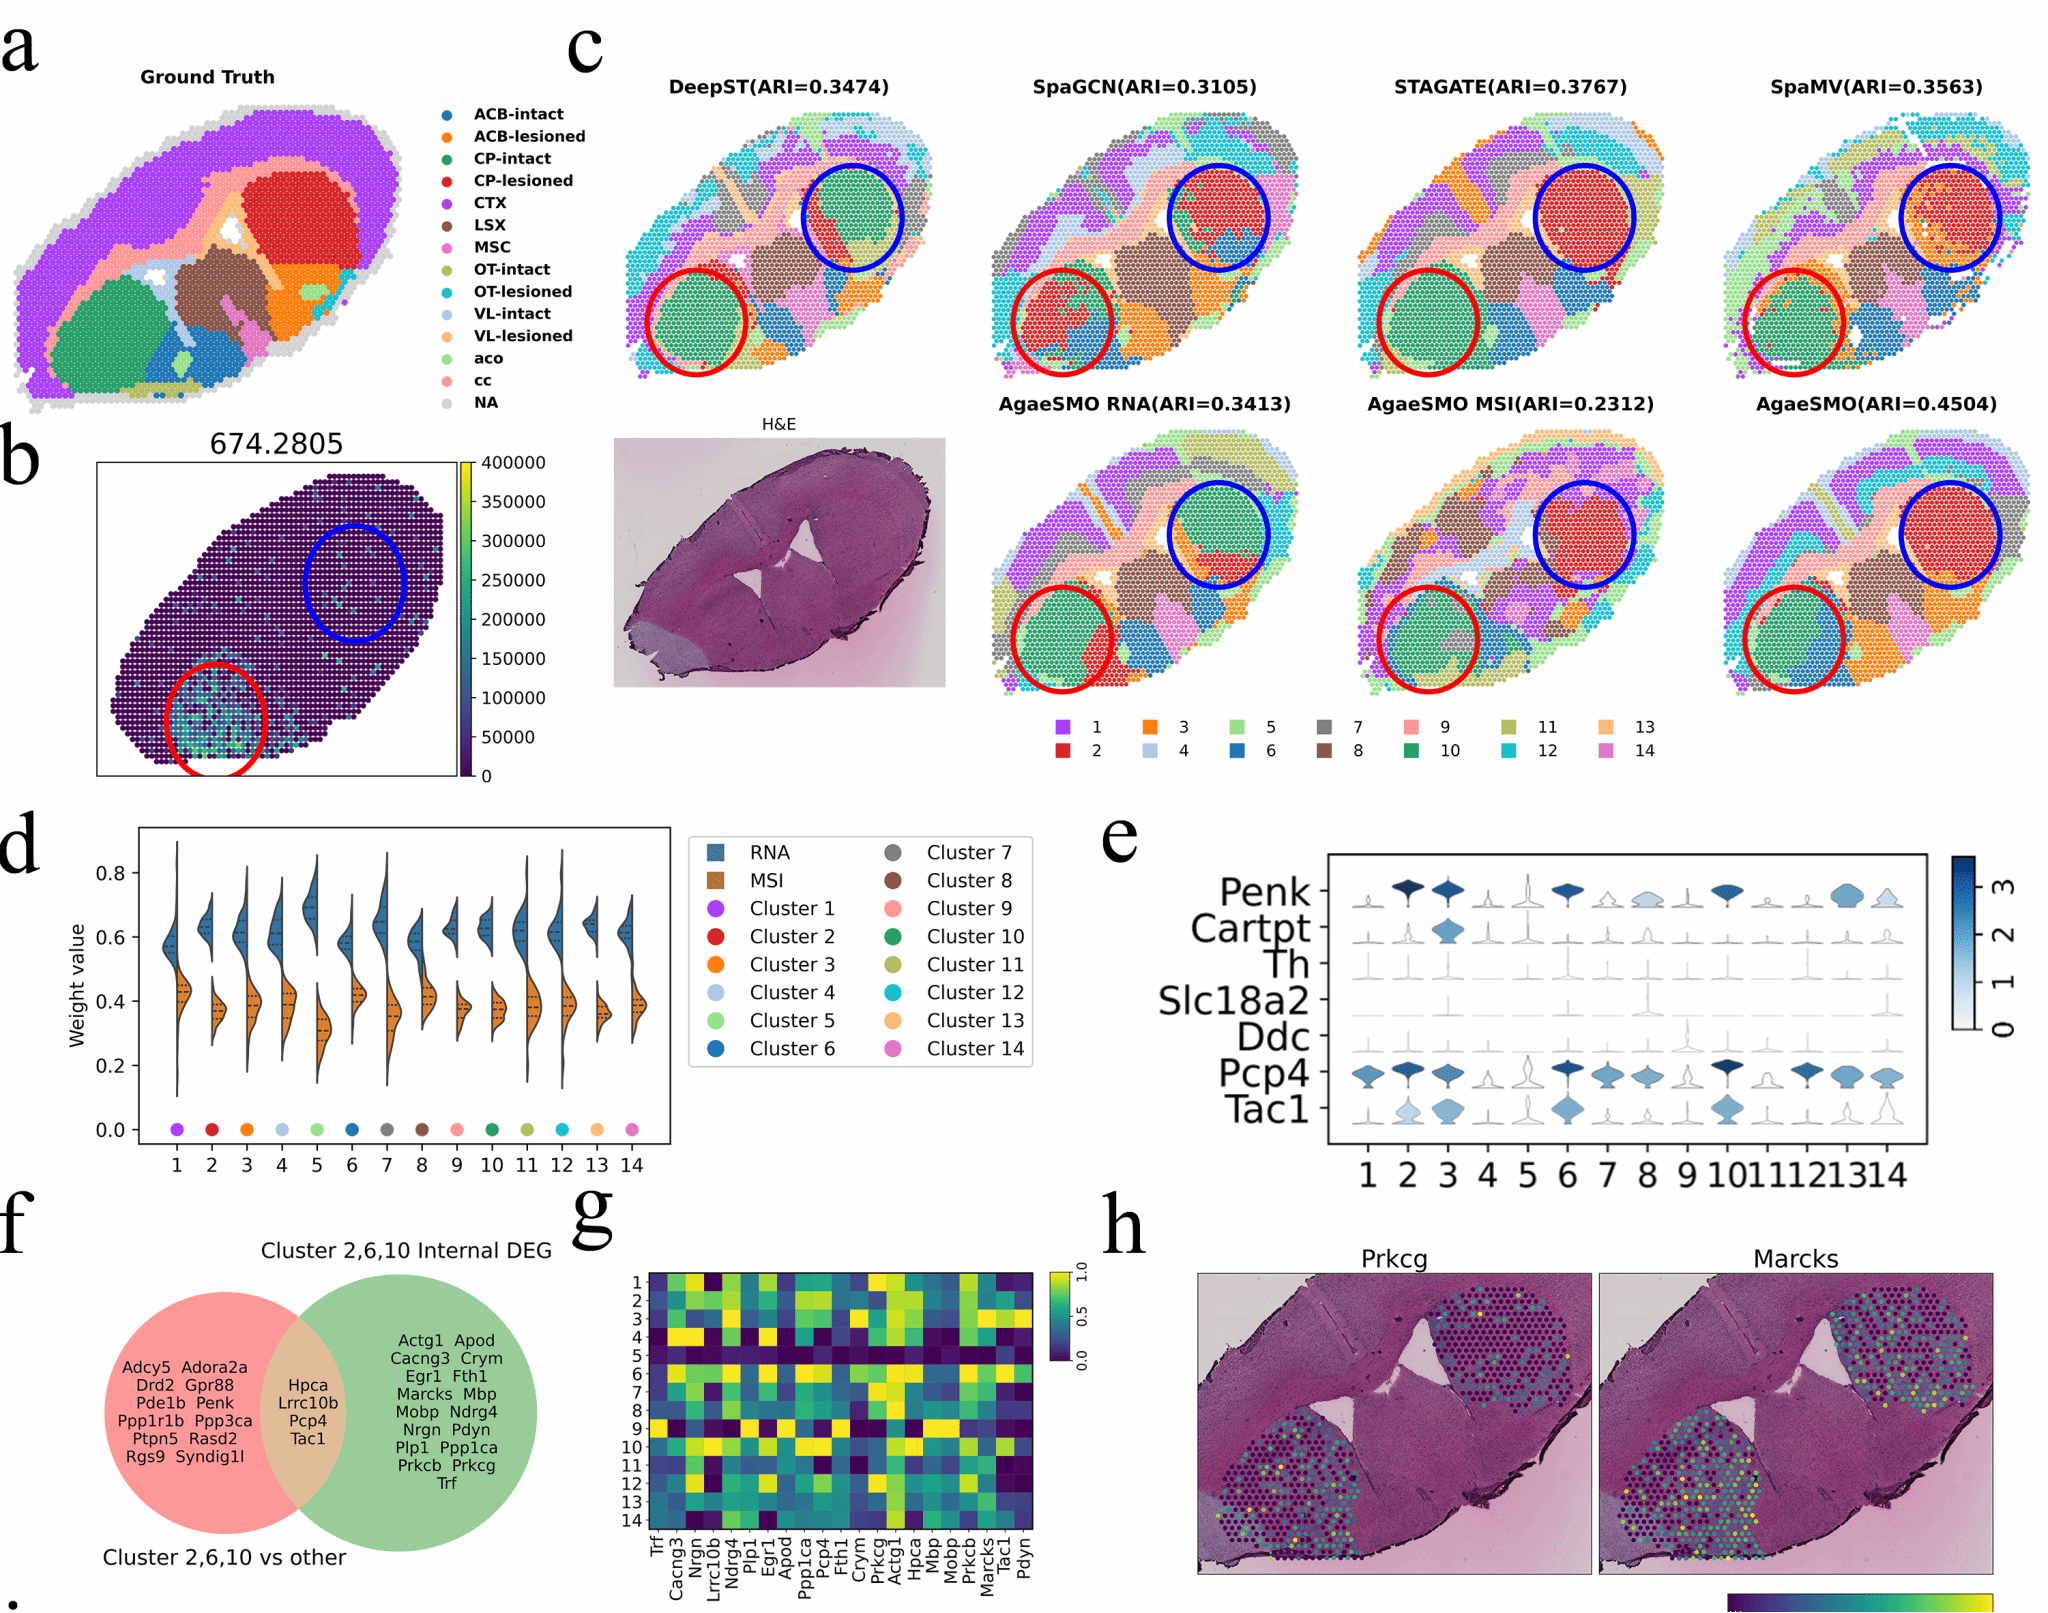
图3. AgaeSMO跨结构非配对空间多组学数据整合实现细胞空间微环境解析和候选基因挖掘
形态学组学模态的整合与跨物种应用
AgaeSMO能将组织切片染色图像(e.g. H&E染色图)通过patch潜入转化为正式的形态组学模态进行有效整合,并在人类乳腺癌数据集和兰花花芽切片数据集中得到充分验证。在兰科蝴蝶兰花芽切片空间组学数据集中,AgaeSMO对形态组学模态的利用更为充分。与DeepST、SpaGCN、STAGATE、STMGraph等方法相比,AgaeSMO对兰花花芽切片空间域的划定更为精准(ARI = 0.261),尤其对苞片、蕊柱、蕊喙和花粉块区域的识别相对更完整;在苞片区域,H&E染色图的形态组学模态权重大于RNA模态。基于AgaeSMO低维推演生成的伪时空轨迹图与兰花花器官的解剖发育结构和顺序高度一致。通过计算pSM值与基因表达的Pearson相关性,研究团队鉴定出多个前人分析中未被发现的可能参与花器官发育调控的相关候选基因:如PAXXG134230编码渗透蛋白样蛋白可能参与花器官发育过程;PAXXG199840(RIC10编码基因)参与诱导ROP-GTPase信号可能调控兰花花粉块发育等。
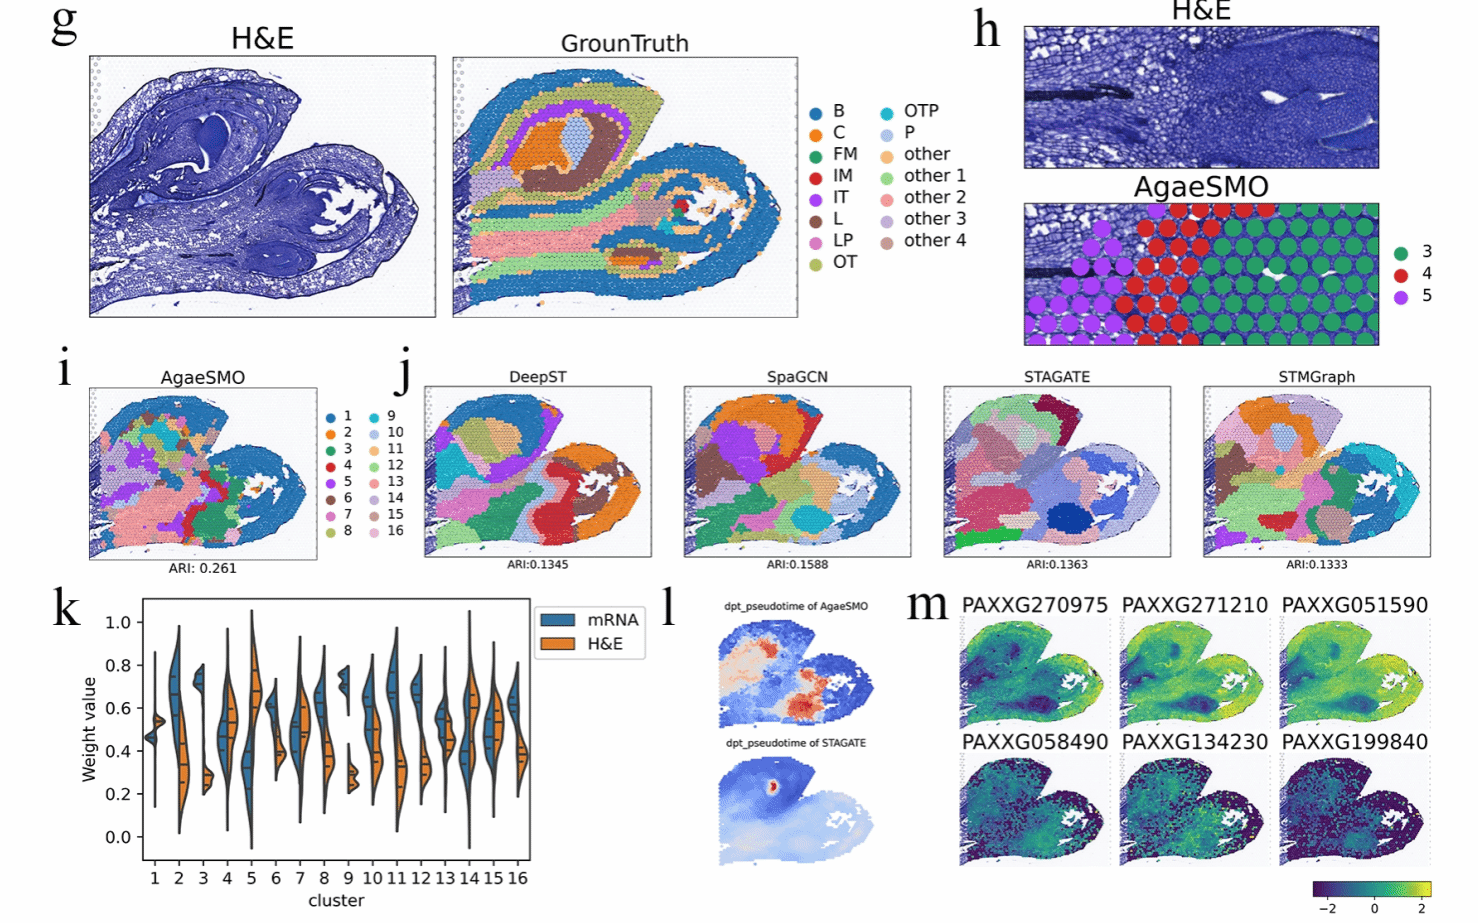
图4. AgaeSMO整合形态组学模态实现精细空间微环境识别和下游候选基因挖掘
综上,本研究从空间多组学模态整合的角度提出了结构非配对多组学整合的AgaeSMO新算法,利用"图注意力编码—交叉注意力对齐—注意力加权融合"技术路径,突破了结构非配对空间组学多模态的灵活整合和形态组学模态信息深度利用的瓶颈。研究填补了非配对空间组学与形态组学精准融合的算法空白,建立了全新的组学多模态表征整合框架,为解析医学微环境异质性、空间病理学特征以及植物器官发育等相关生物学问题的多维时空图谱挖掘、空间调控机制及其生物学可解释性提供了创新性的分析和挖掘工具。
海峡联合研究院基因组学研究中心马晓开教授为论文通讯作者,硕士研究生刘锟鹏为第一作者。博士研究生王天才,硕士研究生苏锦坡、周昊天、申宜麟、秦梦珂、罗英杰,陈政霖、王媛媛也参与了该项研究。福建农林大学海峡联合研究院/生命科学学院为第一单位和通讯单位。该研究得到了国家自然科学基金(32470246, 31700199)、福建省自然科学基金(2021J01142)、福建农林大学基金项目(11899001001, KFb22112XA)的资助。
原文链接: http://doi.org/10.1002/advs.78141